

Spis treści
W SKRÓCIE
Otyłość jest wynikiem zaburzenia zachodzących w organizmie procesów pobierania, gromadzenia i wydatkowania energii. Ostatnie dane, uzyskane głównie w badaniach na zwierzętach sugerują, że na przyswajanie pożywienia i regulację procesów energetycznych wpływają mikroorganizmy stanowiące florę jelitową. Wykazano, że skład flory jelitowej u ludzi i zwierząt szczupłych jest odmienny niż u ludzi i zwierząt
otyłych. W niniejszym artykule dokonujemy przeglądu piśmiennictwa na temat potencjalnego wpływu mikroflory jelitowej na rozwój otyłości i rozważamy możliwości przyszłego leczenia otyłości przez oddziaływanie na tę florę. Wyniki badań wskazują, że aktywność metaboliczna mikroorganizmów zasiedlających jelita ułatwia uzyskiwanie kalorii z trawionego pokarmu oraz magazynowanie ich w tkance tłuszczowej gospodarza, w celu późniejszego wykorzystania. Zauważono, że flora bakteryjna otyłych ludzi czy myszy zawiera mniej bakterii Bacteroides i odpowiednio więcej Firmicutes niż flora osobników szczupłych, co skłania do przypuszczenia, że różnice w pozyskiwaniu energii z trawionego pożywienia mogą być efektem odmiennego składu mikroflory. Lipopolisacharyd bakteryjny mikroorganizmów jelitowych może być tzw. czynnikiem wyzwalającym, łączącym stan zapalny z zespołem metabolicznym wywoływanym przez dietę bogatą w tłuszcze. Interakcje pomiędzy mikroorganizmami jelitowymi wydają się odgrywać istotną rolę w procesach homeostazy energetycznej, tak jak w przypadku tlenowych bakterii wytwarzających metan, które usprawniają metabolizm organizmów beztlenowych. Zgromadzone dane zachęcają do dalszych badań nad mikrośrodowiskiem bakteryjnym ludzkich jelit i pokazują, że w przyszłości modyfikowanie flory bakteryjnej jelit może być jednym ze sposobów leczenia nadwagi i otyłości.
W przypadku wielu krajów rozwiniętych, w tym również USA, można mówić o rozprzestrzeniającej się epidemii otyłości, a w krajach rozwijających się, które stosunkowo niedawno poradziły sobie z problemem niedożywienia, problem otyłości jest przedmiotem coraz poważniejszych obaw. 1 Od 1980 r. odsetek dorosłych osób otyłych wzrósł o ponad 75%, ponad połowa mieszkańców USA ma obecnie nadwagę, a prawie co trzeci dorosły obywatel tego kraju spełnia kliniczne kryteria otyłości. 2 Narastający odsetek otyłych dzieci wskazuje, że sytuacja będzie się pogarszać. Otyłość jest znaczącym problemem zdrowotnym ze względu na swe liczne niekorzystne konsekwencje, takie jak cukrzyca typu 2, powikłania sercowo-naczyniowe, nadciśnienie płucne, zespół obturacyjnego bezdechu podczas snu, refluks żołądkowo-przełykowy, schorzenia układu ruchu, nowotwory czy cała gama zaburzeń psychosocjalnych. 1, 2 Wielokrotnie wykazywano ścisły związek otyłości ze zwiększoną umieralnością. 2 Ekonomiczne i socjalne skutki otyłości oraz jej powikłań są olbrzymie, grożą załamaniem i tak już przeciążonego systemu opieki zdrowotnej. 2
Otyłość jest wynikiem zaburzenia równowagi energetycznej, czyli procesów przyswajania, magazynowania i wydatkowania energii. Ponieważ głód jest dla organizmu większym zagrożeniem niż nadmiar pożywienia, nasze systemy biologiczne nastawione są raczej na ochronę przed spadkiem masy ciała niż przed jej przyrostem (tzw. oszczędny genotyp). Swobodny dostęp do taniej, smacznej i wysokokalorycznej żywności jest skutkiem wysiłków człowieka. W konsekwencji organizm przystosowany do niedoboru pożywienia funkcjonuje w sytuacji przeciwstawnej.
W ciągu ostatniej dekady intensywnie badano procesy fizjologiczne regulujące masę ciała i metabolizm, takie jak generowanie obwodowych bodźców głodu i sytości, centralna integracja tych sygnałów oraz złożona reakcja układu pokarmowego na przyjmowane pożywienie. 3, 4, 5, 6 Masa ciała poszczególnych osób, podobnie jak typ ich budowy jest wynikiem interakcji czynników genetycznych, socjalnych, kulturowych, behawioralnych i środowiskowych. W ciągu ostatnich kilkudziesięciu lat podaż energii wzrosła, a aktywność fizyczna uległa zmniejszeniu, ilościowe określenie tych zmian jest jednak bardzo trudne. 7 Zwiększenie spożycia wysokokalorycznej żywności, szczególnie w połączeniu ze zmniejszeniem aktywności fizycznej, prowadzi do rozwoju otyłości, 8 jednak ze względu na złożoność mechanizmów regulujących równowagę energetyczną konieczne jest rozpatrywanie tego paradygmatu w szerszym kontekście. 9, 10
Przeprowadzone ostatnio badania wykazują, że liczne gatunki bakterii zasiedlających przewód pokarmowy człowieka, określane wspólną nazwą mikroflory jelitowej, mają wpływ na pobór energii z pożywienia i regulację gospodarki energetycznej. Zaobserwowano ponadto znaczne różnice w składzie mikroflory u osób szczupłych i otyłych. Odkrycia te wydają się sugerować możliwość wpływu mikroflory jelitowej na masę ciała, a co za tym idzie – rolę tejże mikroflory w rozwoju otyłości u niektórych chorych. W artykule autorzy analizują dane potwierdzające powyższe założenie oraz próbują odpowiedzieć na pytanie, czy modyfikacja flory jelitowej może stać się w przyszłości jedną z metod leczenia otyłości.
Lokalna flora jelitowa
Identyfikacja
Rozwój wiedzy na temat mikroorganizmów bytujących w jelitach do niedawna ograniczony był możliwościami klasycznych metod mikrobiologicznych, takich jak np. wybiórcze posiewy, które nie sprawdzały się w przypadku wielu szczepów bakterii jelitowych. Wraz z rozwojem nowych, niewymagających wykonywania posiewów metod identyfikacji mikroorganizmów jelitowych (markery molekularne, metody ekologii statystycznej) stała się możliwa znacznie dokładniejsza i bardziej wiarygodna ocena flory bakteryjnej jelit. 11, 12, 13 Szczególnie przydatne, jeśli chodzi o identyfikację i klasyfikację bakterii, okazało się sekwencjonowanie genów 16S rRNA, uzyskanych po amplifikacji bakteryjnego materiału genetycznego, pochodzącego z próbek stolca i błony śluzowej jelita. 14 Badania całego środowiska mikroorganizmów jelitowych przy użyciu tych metod, czym zajmuje się metagenomika, wykazały znacznie większe niż dotychczas zakładano zróżnicowanie bakterii i archeowców [archeowce to prokariotyczne organizmy o budowie odmiennej od bakterii – przyp. red.] oraz umożliwiły poznanie struktury wielu dotychczas nieznanych ekosystemów. 11, 14, 15, 16, 17 Na potrzeby tego artykułu termin metagenomika odnosić będziemy do badań nad wszystkimi genami zawartymi w ludzkim i bakteryjnym genomie. Techniki wykorzystywane w metagenomice przyczyniły się do znaczącego rozwoju wiedzy na temat metod adaptacji bakterii komensalnych i patogennych w organizmie ludzkim. Na rycinie 1 przedstawiono główne etapy tworzenia tzw. biblioteki klonów, metody najczęściej obecnie stosowanej w badaniach molekularnych cech identyfikujacych.
Za pomocą tej techniki badacze oszacowali, że w przewodzie pokarmowym dorosłego człowieka znajduje się ok. 10 12 mikroorganizmów/ml zawartości jelita a liczba gatunków wynosi 500-1000. 11, 13, 18 Wyniki najnowszych badań sugerują, że liczba ta jest w rzeczywistości znacznie większa i obejmuje co najmniej 1800 rodzajów i pomiędzy 15 tys. a 36 tys. gatunków. Organizmy żywe mogą należeć do 3 domen [wg. Woese domena jest w systematyce najwyższą jednostką taksonomiczną, obejmującą królestwa – przyp. red.]: jądrowców, czyli eukaryotów (mają jądro komórkowe z błoną jądrową oddzielającą materiał genetyczny od reszty komórki) oraz bakterii i archeowców, określanych łącznie mianem prokaryotów (organizmy nieposiadające jądra komórkowego). Prokaryota zostały podzielone w oparciu o ich filogenezę (np. różnice i podobieństwa w sekwencji rybosomalnego RNA podjednostki 16S [16S rRNA]). Choć w jelitach dominują bakterie, archeowce i eukaryota również są tam obecne.
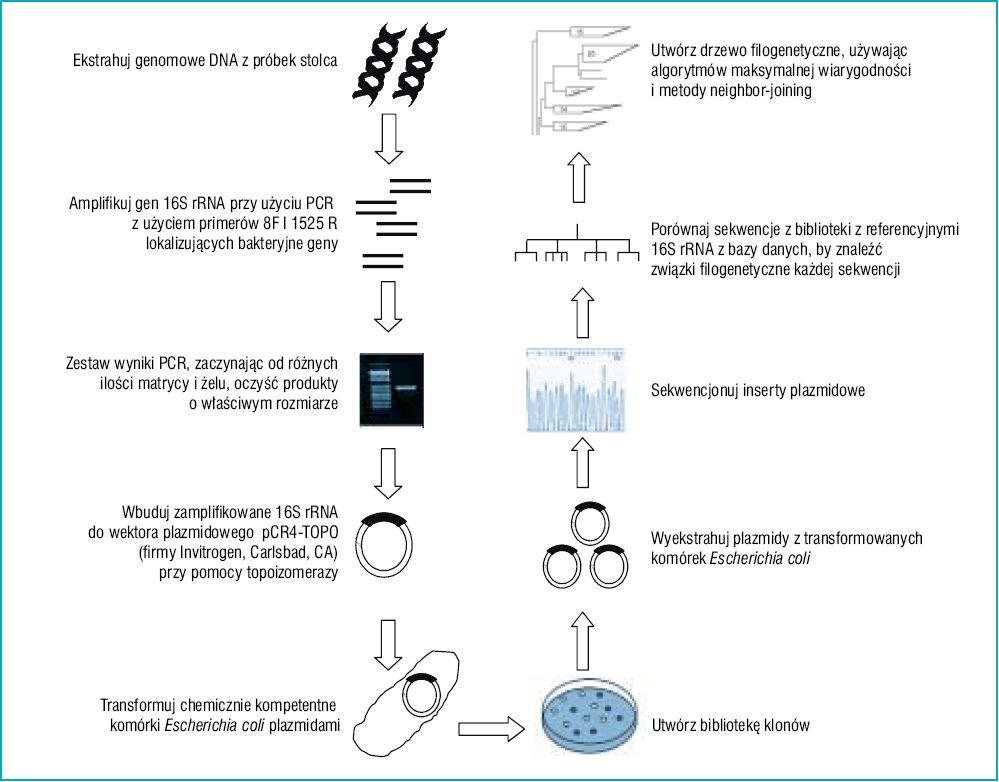
Rycina 1. Etapy tworzenia biblioteki klonów w celu uzyskania wyjątkowego wzoru każdej z biocenoz bakteryjnych
Sekwencjonowanie genów 16S rRNA z biblioteki klonów wykazało, że znaczącą część mikroflory jelitowej stanowią niehodowane dotychczas nowe mikroorganizmy (patrz tab. 1). Eckburg i wsp., 13 stosując technikę klonowania, przeprowadzili ostatnio szczegółowe badania ludzkiej mikroflory jelitowej i stwierdzili, że Bacteroides i Firmicutes stanowią ponad 90% wszystkich bakterii jelitowych, a w przypadku archeowców dominuje Methanobrevibacter smithii – tlenowy mikroorganizm wytwarzający metan.
W miarę jak poznawane będą kolejne sekwencje bakteryjnego DNA, primery do reakcji łańcuchowej polimerazy zachodzącej w czasie rzeczywistym, możliwa stanie się ilościowa analiza gatunków i ich grup. 20 Rosnąca wciąż baza danych pozwoli również na skonstruowanie sond molekularnych dla ilościowej reakcji łańcuchowej polimerazy w czasie rzeczywistym, fluorescencyjnej hybrydyzacji in situ (FISH – fluorescent in situ hybridization) oraz mikromacierzy DNA (DNA microarray chips) i zidentyfikowanie za pomocą tych metod wszystkich gatunków bytujących w jelitach.
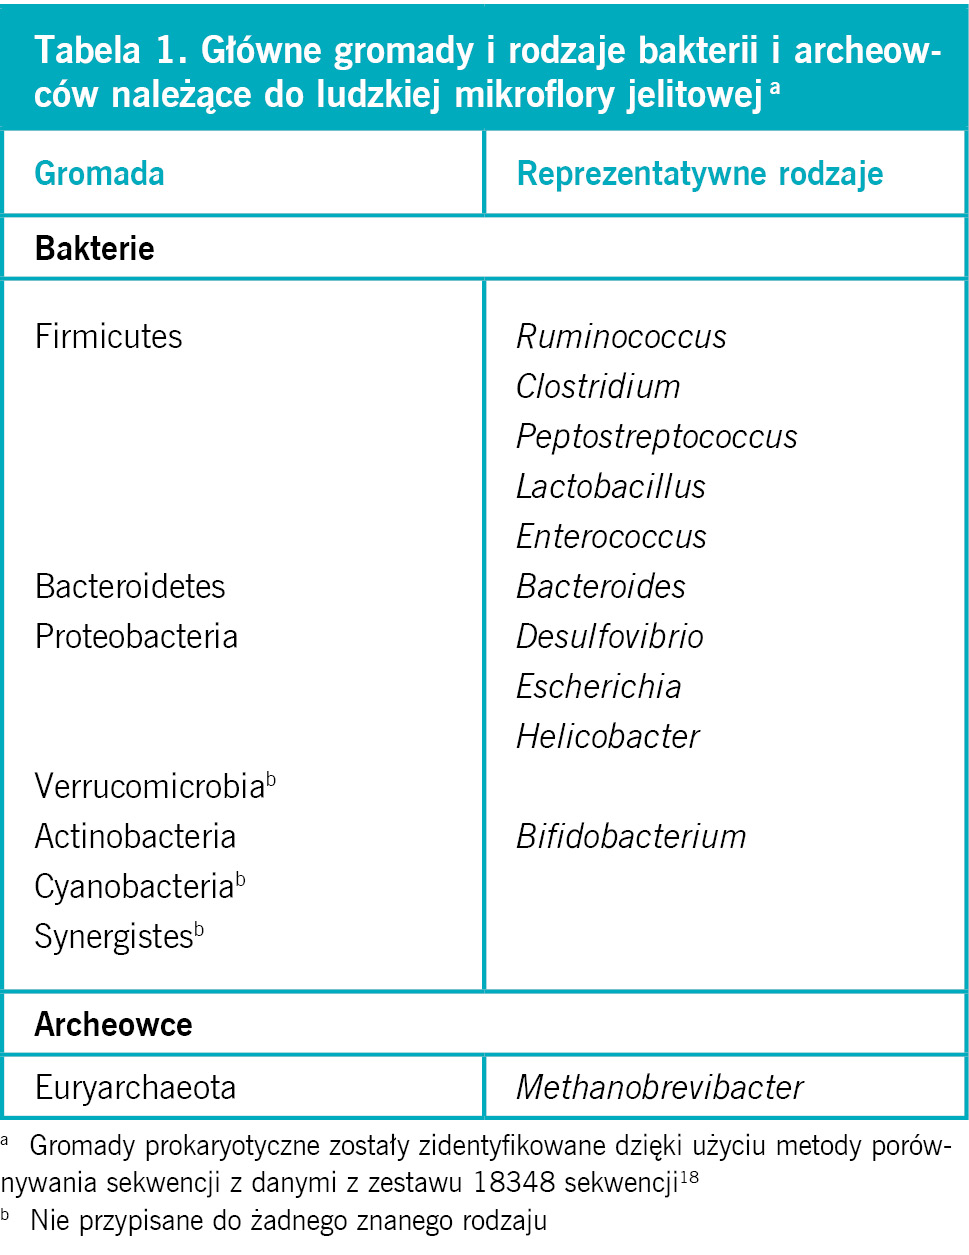
Tabela 1. Główne gromady i rodzaje bakterii i archeowców należące do ludzkiej mikroflory jelitowej a
Okres rozwojowy
Wiedza na temat składu endogennej flory jelitowej jest wciąż niepełna, jednak posiadane dane sugerują, że do zasiedlenia przez nią jelit dochodzi w pierwszym roku życia człowieka, 12, 21 a jej ostateczny, występujący u osób dorosłych skład jest wynikiem działania wielu różnych czynników endo- i egzogennych, 22, 23 takich jak oddziaływanie samych mikroorganizmów, zmiany zachodzące w środowisku jelit czy zmiana diety dziecięcej na dietę dorosłych. Przez długi czas sądzono, że flora jelitowa noworodka przypomina florę matki, ponieważ podczas porodu nabywa on od niej bakterie. 22 Dziś jednak teorię tę poddaje się w wątpliwość, ponieważ najnowsze badania wykorzystujące techniki biologii molekularnej wykazały, że próbki stolca dziecka nie odpowiadają pod względem obecności bakterii jelitowych próbkom rodziców w większym stopniu, niż próbkom pobranym od innych dorosłych w danej populacji. 12 Po zmianie mikroflory jelitowej na typową dla dorosłych jej skład stabilizuje się, choć jak wykazali Ley i wsp. 24 w badaniach przeprowadzonych z użyciem metod molekularnych, niezależnych od posiewu i hodowli bakterii, zdarzają się pewne długotrwałe zmiany, a ich przyczyną są czynniki związane z dietą. Stabilność składu flory jelitowej jest prawdopodobnie wynikiem rozpoznania bakterii nabytych we wczesnym dzieciństwie i wytworzenia na nie tolerancji przez układ odpornościowy jelit, 25 który po fragmentacji i ekspozycji antygenów bakteryjnych identyfikuje je jako własne. Bakterie bytujące w przewodzie pokarmowym dwóch różnych osób mogą natomiast znacznie różnić się między sobą. Większe zróżnicowanie obserwowane jest w składzie flory występującej w świetle jelita (stolec) niż na błonie śluzowej. 13 Badania porównawcze przeprowadzone u dorosłych spokrewnionych ze sobą w różnym stopniu wykazały, że genotyp gospodarza ma większy wpływ na skład mikroflory jelitowej niż dieta, wiek i styl życia. 26, 27
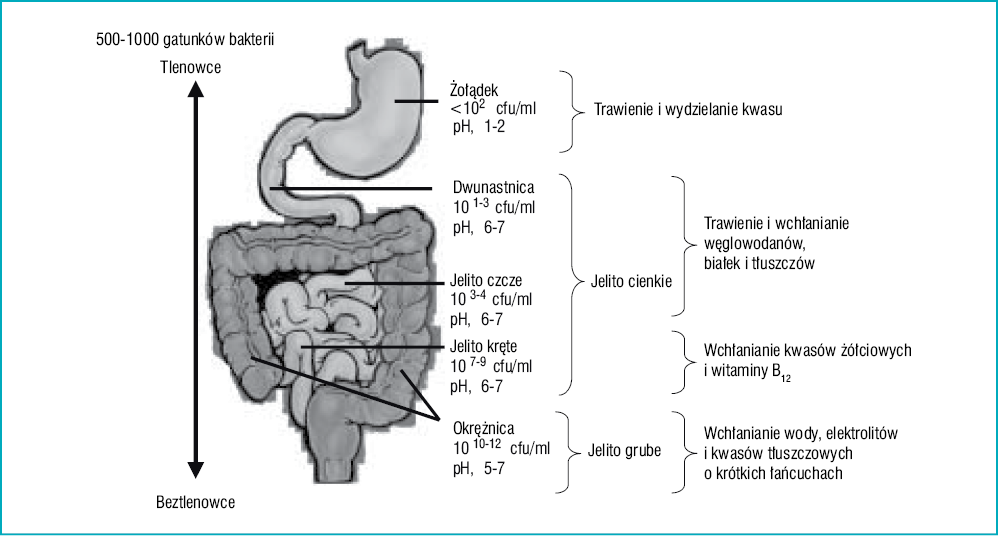
Rycina 2. Warunki fizjologiczne i rozmieszczenie flory bakteryjnej w jelitach
Dokładna liczba i rodzaje bakterii w przewodzie pokarmowym uzależnione są również od zmian mikrośrodowiska, obejmujących pH oraz dostępność tlenu i pożywienia w kolejnych częściach przewodu pokarmowego. Na rycinie 2 przedstawiono najważniejsze właściwości fizjologiczne kolejnych odcinków jelit ludzkich i ich wpływ na charakterystykę mikrobiologiczną jelit. Tradycyjne badania oparte na hodowlach bakteryjnych wykazały, że dolna część przewodu pokarmowego jest zasiedlona przez większą liczbę bakterii niż górna część i skolonizowana głównie przez drobnoustroje beztlenowe, podczas gdy w górnej części bytują głównie mikroorganizmy tlenowe. 21, 28 Końcowa część jelita krętego stanowi rodzaj strefy przejściowej pomiędzy występującą powyżej florą tlenową, a jelitem grubym, z jego mikroflorą beztlenową. 21 Po przejściu przez zastawkę Bauchina miano bakterii wzrasta z 10 7 -10 9 drobnoustrojów/ml w końcowej części jelita krętego do 10 10 -10 12 drobnoustrojów/ml w okrężnicy. 21 Ostatnie badania przy użyciu metod biologii molekularnej wykazały, że te same typy filogenetyczne bakterii obecne są w różnych częściach jelita, jednak w poszczególnych lokalizacjach dominują różne podtypy. 19
Funkcje metaboliczne
Badania z wykorzystaniem myszy hodowanych w sterylnych warunkach (germ-free) pokazały, że flora bakteryjna jelit jest niezbędna dla prawidłowego funkcjonowania układu pokarmowego, układu odpornościowego oraz prawidłowego trawienia pożywienia. 21, 29, 30, 31 Dokładna rola bakterii jelitowych nie została dotychczas poznana, wiadomo jednak, że biorą one udział w wielu procesach związanych z rozwojem i funkcjonowaniem układu pokarmowego, takich jak dojrzewanie i wymiana enterocytów, immunomodulacja, czynność motoryczna przewodu pokarmowego oraz metabolizm leków. 25, 28, 32, 33, 34, 35 Drobnoustroje pełnią również ważne funkcje metaboliczne, polegające na rozkładaniu obecnych w pożywieniu toksyn i karcynogenów, syntezie substancji śladowych, fermentowaniu niestrawialnych składników pożywienia, współudziale w procesie wchłaniania elektrolitów i soli mineralnych. Wpływają one także na wzrost i różnicowanie enterocytów oraz komórek nabłonka jelita grubego przez produkcję krótkołańcuchowych kwasów tłuszczowych. 31, 36, 37 Wreszcie, prawidłowa flora jelita grubego skutecznie chroni przed kolonizacją światła jelit przez drobnoustroje patogenne, takie jak Escherichia coli, Clostridia, Salmonella czy Shigella. 38, 39 Na podstawie obserwacji poczynionych podczas niedawnego badania, Gill i wsp. 11 podkreślają znaczenie wkładu, jaki wniosły mikroorganizmy symbiotyczne do metabolizmu człowieka dzięki zestawowi bakteryjnych genomów określanemu mianem mikrobiomu. Po analizie składu bakterii fekalnych zdrowych ludzi badacze ci przeszukali biblioteki DNA w celu odnalezienia sekwencji genów kodujących enzymy odgrywające rolę w metabolizmie. Porównali oni sekwencje kodujące enzymy mikroorganizmów z sekwencjami człowieka i zidentyfikowali enzymy wpływające na metabolizm gospodarza m.in. przez maksymalizowanie ilości energii uzyskiwanej z trawionego pożywienia, utrzymywanie homeostazy w organizmie gospodarza, a także dekontaminację jelita.
Związek mikroorganizmów z otyłością.
Aktywność metaboliczna mikroflory jelitowej ułatwia pozyskiwanie energii z trawionych składników pożywienia, pomaga magazynować tę energię w tkance tłuszczowej człowieka w celu późniejszego jej wykorzystania oraz zapewnia energię i pożywienie niezbędne dla wzrostu czy rozmnażania samych bakterii. Indywidualne różnice we wspomnianym wykorzystaniu energii mogą stanowić logiczne z punktu widzenia fizjologii wyjaśnienie obserwowanej dość często sytuacji, kiedy to otyli pacjenci nie wydają się spożywać nadmiernych ilości pokarmu. Sugeruje się, że mikroflora jelitowa każdego człowieka ma pewną „wydolność” metaboliczną, a do otyłości predysponuje określona kompozycja gatunków bakterii jelitowych. 34
Uzyskiwanie energii z pożywienia
Backhed i wsp. 40 odkryli w serii doświadczeń, że w organizmach młodych myszy hodowanych w zwykłych warunkach zawartość tłuszczu jest o 40% większa niż u myszy hodowanych sterylnie (germ-free), mimo że zjadały mniej pożywienia niż myszy germ-free. Następnie drobnoustroje zasiedlające dystalną część jelita myszy przenoszono do jelit myszy germ-free (proces ten określa się jako konwencjonalizację), uzyskując w ciągu 2 tygodni 60% wzrost tłuszczowej masy ciała przy niezmienionej ilości przyjmowanego pokarmu i stałej ilości traconej energii. Wyniki tych doświadczeń potwierdzają hipotezę mówiącą, że skład mikroflory jelitowej wpływa na ilość energii uzyskiwanej z trawionego pożywienia. Przyrostowi masy ciała towarzyszyły: insulinooporność, hypertrofia adipocytów oraz wzrost stężenia leptyny i glukozy we krwi.
Wyjaśniając mechanizmy leżące u podstaw tych zjawisk, badacze wykazali, że bakterie nasilają wchłanianie monosacharydów w jelicie oraz indukują lipogenezę w wątrobie gospodarza; czynią to za pośrednictwem dwóch białek sygnałowych: białka ChREBP (carbohydrate response element-binding protein) i białka SREBP-1 (liver sterol response element-binding protein type-1). Na koniec, używając myszy pozbawionych genu dla czynnika tkankowego indukowanego głodzeniem (Fiaf – fasting-induced adipocyte factor) wykazali, że mikroorganizmy jelitowe hamują jelitowy Fiaf, znany również pod nazwą białka podobnego do angiopoetyny 4. Fiaf hamuje aktywność lipazy lipoproteinowej, przez co ułatwia uwalnianie kwasów tłuszczowych ze związanych z lipoproteinami triacylogliceroli, które następnie wychwytywane są przez mięśnie i tkankę tłuszczową. W omawianym badaniu blokowanie Fiaf skutkowało wzrostem aktywności lipazy lipoproteinowej w komórkach tłuszczowych i nasileniem procesu magazynowania kalorii w postaci tłuszczu, co skłoniło Backheda i wsp. do sformułowania tezy, że mikroorganizmy jelitowe wpływają na gospodarkę energetyczną za pośrednictwem serii wzajemnie powiązanych mechanizmów. Do mechanizmów tych należą: rozkład zawartych w pożywieniu niestrawialnych polisacharydów do form prostszych, wchłanialnych związków, wchłanianie w jelitach monosacharydów i krótkołańcuchowych kwasów tłuszczowych oraz ich następowa konwersja do tłuszczów w wątrobie, a także wpływ na ekspresję genów gospodarza i w efekcie nasilenie magazynowania tłuszczów w komórkach tłuszczowych.
W kolejnym badaniu, mającym na celu wyjaśnienie mechanizmów odpowiedzialnych za brak otyłości u myszy germ-free, Backhed i wsp. 41 obserwowali myszy germ-free żywione klasyczną dietą zachodnią, zawierającą duże ilości tłuszczu i cukrów. Zauważyli, że myszy germ-free chronione są przed otyłością pokarmową przez dwa wzajemnie się dopełniające, lecz niezależne mechanizmy nasilające metabolizm kwasów tłuszczowych: 1) zwiększone stężenie Fiaf będące sygnałem do wytwarzania koaktywatorów dla PPARγ (peroxisome proliferator-activated receptor γ coactivator), co jak wiadomo nasila ekspresję genów kodujących białka regulujące intensywność utleniania kwasów tłuszczowych w mitochondriach; 2) zwiększoną aktywność kinazy proteinowej zależnej od monofosforanu adenozyny (AMPK – adenosine monophosphate-activated protein kinase), enzymu regulującego stan energetyczny komórki. Odkrycia te sugerują, że mikroorganizmy jelitowe mogą wpływać na obydwie składowe bilansu energetycznego, regulując uzyskiwanie energii z pożywienia (Fiaf) i wpływając na ekspresję genów odpowiedzialnych za magazynowanie i wydatkowanie energii. 41
Turnbaugh i wsp. 42 szukali wyjaśnienia, w jaki sposób geny mikroorganizmów jelitowych przyczyniają się do otyłości. Na początku scharakteryzowali oni mikrobiomy mikroorganizmów bytujących w dystalnej części jelita u zmodyfikowanych genetycznie, pozbawionych leptyny otyłych myszy (ob./ob.) i myszy szczupłych (ob./+ i +/+). Użyto myszy, aby uniknąć kłopotliwych różnic w diecie, środowisku i genotypie, które zwykle czynią podobne badania z udziałem ludzi trudnymi w interpretacji. W serii doświadczeń z użyciem technik metagenomiki porównawczej wykazano, że mikroorganizmy w jelitach myszy ob./ob. posiadają geny kodujące enzymy, dzięki którym możliwy jest rozkład niestrawialnych w inny sposób polisacharydów, będących częścią pożywienia. W stolcu otyłych myszy znaleźli oni ponadto więcej końcowych produktów fermentacji (kwas octowy i masłowy) oraz mniejszą liczbę kalorii, co skłoniło badaczy do przypuszczenia, że mikroorganizmy bytujące w jelitach tych myszy ułatwiają uzyskiwanie dodatkowych kalorii z trawionego pożywienia.
Aby wykazać, że skład mikroflory jelitowej ma wpływ na masę ciała, naukowcy dokonali transferu mikroorganizmów z jelit myszy ob./ob. i myszy szczupłych do jelit szczupłych myszy germ-free. Po dwóch tygodniach myszy, które otrzymały bakterie od myszy ob./ob., pozyskiwały więcej kalorii z pożywienia i wykazywały znacznie większy przyrost tkanki tłuszczowej niż myszy, które otrzymały bakterie od myszy szczupłych (średni przyrost tkanki tłuszczowej SD, 47%8,3% vs 27%3,6% co odpowiada różnicy 4 kcal lub 2% wszystkich spożytych kalorii przy założeniu, że 9,3 kcal przypada na 1 g tkanki tłuszczowej). 42 Uzyskane wyniki sugerują, że różnice w pozyskiwaniu kalorii z trawionego pożywienia mogą być uzależnione od składu mikroflory jelitowej, co potwierdza potencjalny udział flory jelitowej w patogenezie otyłości. Wyniki te skłaniają również do stawiania pytań. Czy tak niewielkie różnice w uzyskiwaniu energii z pożywienia mogą przekładać się na klinicznie znaczące różnice masy ciała? Jak zmiany zachodzące w organizmie gospodarza (jak np. mutacja genu leptyny u myszy ob./ob.) determinują różnice w składzie mikroflory jelitowej? Czy różnice te utrzymują się przez dłuższy czas? Aby wyjaśnić te wątpliwości konieczne jest przeprowadzenie dalszych badań.
Przewlekły uogólniony stan zapalny
Na podstawie ostatnich doniesień, według których otyłość i insulinooporność związane są z przewlekłym uogólnionym stanem zapalnym o nieznacznym nasileniu, 43 Cani i wsp. 44 zaproponowali kolejny mechanizm łączący mikroflorę jelitową z rozwojem otyłości. Założyli oni, że bakteryjny lipopolisacharyd (LPS), którego źródłem są Gram-ujemne bakterie bytujące w jelitach, jest swego rodzaju czynnikiem wyzwalającym, łączącym stan zapalny z zespołem metabolicznym indukowanym dietą bogatą w tłuszcze. W serii doświadczeń na myszach otrzymujących pożywienie o dużej zawartości tłuszczu, wykazali oni, że: 1) dieta bogata w tłuszcze zwiększa endotoksemię i wpływa na to, które gatunki bakterii dominują w mikroflorze jelitowej: redukuje ilość zarówno bakterii Gram-ujemnych (grupa Bacteroides), jak i Gram-dodatnich (grupa Eubacterium rectale – Clostridium coccoides i bifidobacteria), zmieniając stosunek bakterii Gram-ujemnych do Gram-dodatnich na korzyść tych pierwszych; 2) przewlekła endotoksemia indukuje rozwój otyłości, powstawanie insulinooporności oraz cukrzycy. Używając myszy ze zmutowanym genem CD14 żywionych dietą bogatą w tłuszcze, wykazali oni, że endotoksemia nasila ekspresję cytokin prozapalnych (TNF-α, IL-1, IL-6, inhibitora 1 aktywatora plazminogenu) w mechanizmie zależnym od CD14. Będąc molekułą o kluczowym znaczeniu, CD14 wiąże bakteryjny lipopolisacharyd (LPS) na powierzchni komórek układu odpornościowego gospodarza, powodując wydzielanie cytokin prozapalnych. 45 Sugeruje się, że kompleks LPS/CD14 reguluje próg wrażliwości na insulinę i w związku z tym wpływa na występowanie otyłości i cukrzycy. 44 Badania z udziałem ludzi potwierdziły zasadność powyższych wniosków. Wykazano, że leczenie polimyksyną B, antybiotykiem o dużej skuteczności w stosunku do bakterii Gram-ujemnych, zmniejszało ekspresję LPS i stopień stłuszczenia wątroby. 46 Najnowsze badania wykazały większe stężenie LPS u chorych na cukrzycę typu 2 niż u starannie dobranych pacjentów z grupy kontrolnej, u których wykluczono cukrzycę. 47 Na rycinie 3 przedstawiono prawdopodobne mechanizmy, za pośrednictwem których mikroflora bakteryjna wpływa na rozwój otyłości.
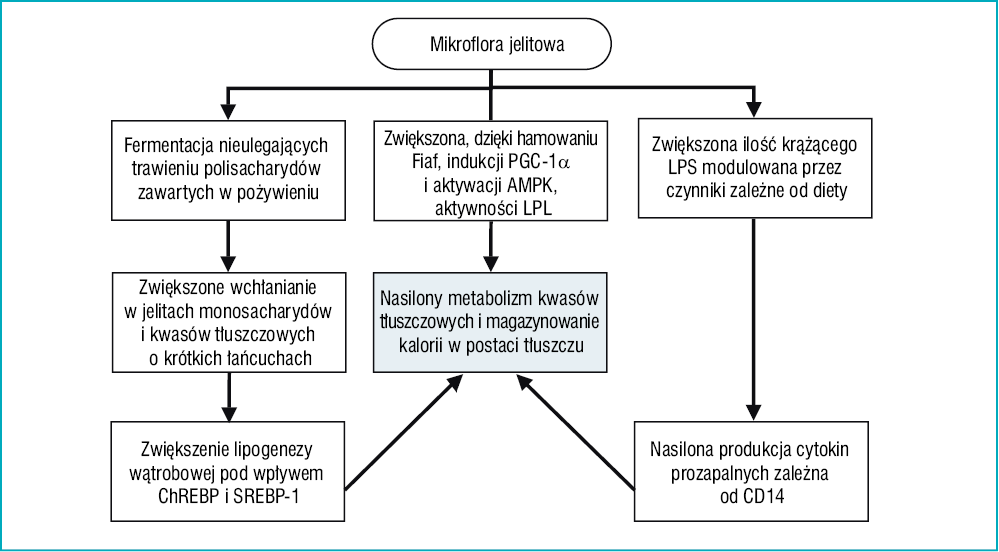
Rycina 3. Mechanizmy, za pośrednictwem których mikroorganizmy jelitowe mogą przyczyniać się do rozwoju otyłości
Skład mikroflory jelitowej u otyłych i szczupłych myszy
Aby porównać bardzo dużą liczbę gatunków mikroorganizmów jelitowych obecnych w jelitach otyłych i chudych myszy, Ley i wsp. 18 analizowali sekwencję genów 16S rRNA bakterii pobranych z kątnic myszy genetycznie otyłych (ob./ob.), ich rodzeństwa (ob./+ i +/+) oraz ich matek ob./+, przy czym wszystkie myszy były karmione tym samym, bogatym w polisacharydy pokarmem. Wykazali oni, że u myszy ob./ob. liczba bakterii Bacteroides była o 50% mniejsza a liczba Firmicutes odpowiednio większa niż u myszy chudych, czego nie można przypisać różnicom w spożywanym pokarmie. Zmiany te zaobserwowano w całej grupie myszy i nie były one wynikiem nieznacznego zwiększenia bądź zmniejszenia liczby Bacteroides czy Firmicutes u poszczególnych osobników. Wyjaśnienie mechanizmów odpowiedzialnych za te różnice wymaga dalszych badań. Ley i wsp. wykazali również istnienie silnej zależności pomiędzy stopniem pokrewieństwa a składem mikroflory jelitowej, choć różnice w składzie flory obserwowane u otyłych myszy nie były zależne od stopnia pokrewieństwa czy płci. Wyniki omawianych badań sugerują istnienie różnic w składzie mikroflory jelitowej myszy chudych i otyłych, co wskazywałoby na możliwość manipulowania składem tejże mikroflory także u ludzi, w celu przywrócenia równowagi energetycznej u osób otyłych.
Skład mikroflory jelitowej u otyłych i szczupłych ludzi
Aby wykazać, że doświadczenia na zwierzętach przekładają się na człowieka, Ley i wsp. 24 monitorowali skład bakterii obecnych w stolcu 12 otyłych osób podczas trwającego rok programu zmniejszania masy ciała, przydzielając ich w sposób losowy do grupy otrzymującej dietę o obniżonej zawartości tłuszczu lub obniżonej zawartości węglowodanów. Podobnie jak podczas doświadczeń na myszach, w składzie mikroflory jelitowej badanych ludzi dominowali przedstawiciele gatunków Bacteroides i Firmicutes, przy czym skład ten wykazywał znaczną stałość osobniczą. Przed wdrożeniem diety w mikroflorze jelitowej osób otyłych mniej było bakterii Bacteroides a więcej Firmicutes niż w grupie kontrolnej u osób szczupłych. Po zmniejszeniu masy ciała stosunek Bacteroides do Firmicutes zwiększył się w stopniu zależnym od procentowej redukcji masy ciała, niezależnym natomiast od podaży kalorii. Bakterie Bacteroides stanowiły ok. 3% wszystkich bakterii jelitowych u osób badanych przed redukcją masy ciała i ok. 15% wszystkich bakterii jelitowych po zakończonym z powodzeniem programie redukcji masy ciała. Nieznana jest jak dotąd przyczyna obecności większej liczby bakterii Firmicutes w jelitach osób otyłych. Jest to być może spowodowane właściwościami jelita gospodarza, dzięki którym wyselekcjonowana została ta akurat gromada, obejmująca ponad 250 rodzajów i zróżnicowane możliwości metaboliczne. Dla przykładu, wiele szczepów Bacillus należy do fakultatywnych tlenowców, podczas gdy bakterie z rodzaju Clostridium to obligatoryjne beztlenowce. Duże zróżnicowanie w rodzinie Firmicutes może powodować skuteczniejsze pozyskiwanie energii z różnych substancji organicznych. Wyjaśnienie związku przyczynowo-skutkowego pomiędzy otyłością a florą bakteryjną jelit wymaga dalszych badań.
Homeostaza energetyczna
Choć bakterie Bacteroides i Firmicutes są dominującymi mikroorganizmami mikroflory jelitowej, to obecne są tam również wytwarzające metan archeowce. Metanogeneza archeowcowa, zapobiegając gromadzeniu się wodoru i innych produktów przemiany materii, zwiększa skuteczność rozkładu polisacharydów. Co więcej, produkcja metanu pochłania duże ilości energii i wolnych elektronów, więc energia ta jest niedostępna dla organizmu gospodarza. Z tego powodu hodowcy bydła próbują zmniejszyć powstawanie metanu w żwaczach krów. W odróżnieniu od żwacza, w którym bytują drobnoustroje metanogenne, utylizujące kwas octowy, takie jak Methanosarcina species, 48 w ludzkim przewodzie pokarmowym dominują archeowce Methanobrevibacter species, utleniające wodór i kwas mrówkowy, 13 co wskazuje, że powstające w wyniku działania bakterii fermentujących w jelicie grubym kwasy masłowy i octowy nie są wykorzystywane przez drobnoustroje wytwarzające metan. Methanobrevibacter species, usuwając wodór i kwas mrówkowy, mogą powodować zwiększone wytwarzanie przez bakterie jelitowe kwasu octowego i masłowego, będących ważnymi źródłami węgla dla komórek nabłonka jelitowego. W rezultacie tego typu współdziałanie pomiędzy bakteriami a archeowcami w jelicie człowieka może prowadzić do zwiększenia ilości energii uzyskiwanej z zawartych w pożywieniu niestrawialnych polisacharydów.
W celu wyjaśnienia roli poszczególnych gatunków bakterii Samuel i Gordon 49 skolonizowali jelita myszy germ-free drobnoustrojami Methanobrevibacter smithii, Bacteroides thetaiotaomicron bądź obydwoma gatunkami tych drobnoustrojów. Bacteroides thetaiotaomicron jest powszechnie występującą w jelicie grubym bakterią skutecznie metabolizującą polisacharydy i przez to umożliwiającą trawienie oraz uzyskiwanie dodatkowej energii z niestrawialnych w inny sposób węglowodanów. 50 Najważniejszym spośród archeowców występujących w jelicie ludzkim jest Methanobrevibacter smithii, stanowiący 10% wszystkich mikroorganizmów beztlenowych w jelitach zdrowych osób dorosłych. 31 Wpływ archeowców na zdrowie człowieka nie został jednak wyjaśniony. Samuel i Gordon 49 wykazali, że jednoczesna kolonizacja M. smithii i B. thetaiotaomicron zwiększa skuteczność uzyskiwania energii z polisacharydów zawartych w pożywieniu i ilość tkanki tłuszczowej bardziej niż kolonizacja każdym z tych drobnoustrojów z osobna. Co więcej Samuel i wsp. 51 zauważyli, że M. smithii wpływał na metabolizm B. thetaiotaomicron, powodując, że ten żywił się głównie polisacharydami zawierającymi fruktozę, które metabolizował do mniejszych cząstek, w tym mrówczanu, będącego ważnym źródłem energii dla M. smithii. Odkrycia te potwierdzają nie tylko korzystny wpływ archeowców na trawienie pokarmów, lecz także rolę wzajemnych oddziaływań mikroorganizmów jelitowych w utrzymaniu homeostazy energetycznej. Prezentują one także interesującą możliwość wykorzystania M. smithii jako czynnika terapeutycznego w leczeniu otyłości, powodującego zmniejszenie liczby kalorii uzyskiwanych z trawionego pożywienia.
Modyfikacja ekosystemu jelitowego jako strategia terapeutyczna
Najlepszą niechirurgiczną metodą leczenia otyłości może być wprowadzanie niewielkich, lecz trwałych zmian w diecie przy jednoczesnym zwiększaniu aktywności fizycznej w celu przełamania dotychczasowego schematu regulacji równowagi energetycznej w organizmie i zapobiegania powstawaniu dodatniego bilansu energetycznego. 3 Dokładna rola mikroorganizmów jelitowych w regulacji bilansu energetycznego pozostaje nieznana, ale badania systemów regulujących ten bilans sugerują, że skumulowany efekt działania bakterii jelitowych może na dłuższą metę należeć do ważniejszych czynników wpływających na równowagę energetyczną. Oczywiście nic nie zastąpi odpowiedniej diety i wysiłku fizycznego, jednak modyfikacja mikroflory jelitowej może okazać się skuteczną metodą leczenia otyłości, co istotne, pozbawioną działań niepożądanych. Stosowanie leków przeciwbakteryjnych, prebiotyków i probiotyków może skutkować nieswoistymi zmianami mikroflory jelitowej.
Leki przeciwbakteryjne
Ostatnio Brugman i wsp. 52 udowodnili, że leczenie przeciwbakteryjne zmniejsza zachorowalność i opóźnia wiek wystąpienia cukrzycy u podatnych na cukrzycę szczurów laboratoryjnych. Wykorzystując metodę hybrydyzacji in situ (FISH), wykazali oni, że skład mikroflory jelitowej szczurów, u których doszło do rozwoju cukrzycy różnił się znacznie od składu mikroflory szczurów, które nie zapadły na tę chorobę. Różnica widoczna była szczególnie w liczbie bakterii Bacteroides – szczury, u których nie doszło do rozwoju cukrzycy miały ich znacznie mniej. Badacze założyli, że spowodowane leczeniem przeciwbakteryjnym zmiany w składzie mikroflory jelitowej prowadziły do zmniejszenia puli antygenów, a co za tym idzie zmniejszenia nasilenia przewlekłego procesu zapalnego, uszkadzającego komórki β wysp trzustkowych. Badania Brugmana i wsp. nie dotyczyły bezpośrednio otyłości, wskazały jednak na możliwości modulowania składu mikroflory jelitowej jako metodę leczenia.
Prebiotyki
Prebiotykami nazywane są nieulegające trawieniu oligosacharydy, które działają na populacje bakterii jelitowych jak nawóz, przyspieszając wzrost pożytecznych organizmów komensalnych, np. Bifidobacterium i Lactobacillus species. 53 Fruktooligosacharydy metabolizowane są przez niektóre bakterie jelitowe, a następnie modulują wzrost populacji pożytecznych bakterii w jelicie grubym. Inulina i oligofruktoza to występujące w przyrodzie fruktooligosacharydy, które nie ulegają strawieniu w górnej części przewodu pokarmowego. Mają one wiele właściwości czynnościowych i własności odżywczych, jak np. zdolność stymulowania wzrostu pożytecznych organizmów komensalnych. 53, 54 W dwóch przeprowadzonych niedawno badaniach, podczas których szczury żywiono standardową, 55 bądź bogatą w tłuszcze 56 dietą, dodanie do pożywienia oligofruktozy zmniejszyło ilość uzyskiwanej energii oraz zapobiegało przyrostowi masy ciała i tkanki tłuszczowej, przy czym efekty te osiągane były za pośrednictwem endogennych peptydów jelitowych, biorących udział w regulacji łaknienia i masy ciała. 57 Takie obserwacje wydają się przeczyć przedstawionym powyżej wynikom badań sugerującym, że nieulegające trawieniu polisacharydy mogą przynajmniej częściowo odpowiadać za przyrost masy u zmodyfikowanych genetycznie, otyłych myszy, przez zwiększenie pozyskiwanych z trawionego pożywienia kalorii. 42 Ta sprzeczność wynikać może z wielu czynników, takich jak specyficzny osobniczo skład mikroflory jelitowej (do tej pory zidentyfikowanej jedynie w części) oraz innych działań niepożądanych błonnika, takich jak opóźnione opróżnianie żołądka czy nasilanie uczucia sytości. 58 Kolejne dowody na wpływ prebiotyków na redukcję masy ciała przyniosło badanie, podczas którego zdrowe osoby żywiono pasztecikami, do których dodano inuliny, błonnika pochodzącego z pestek łubinu i nieulegającej trawieniu skrobi zamiast tłuszczu. Spowodowało to u tych osób redukcję tkanki tłuszczowej oraz ilości energii uzyskiwanej z pożywienia. 59 W badaniu pilotażowym typu krzyżowego z pojedynczą ślepą próbą z udziałem 10 zdrowych ochotników o prawidłowej masie ciała, dwutygodniowe przyjmowanie oligofruktozy spowodowało przyspieszone występowanie uczucia sytości po śniadaniu i kolacji oraz znacząco osłabiło uczucie głodu i wydłużyło czas od śniadania do kolejnego posiłku, prowadząc w efekcie do zmniejszenia przyjmowanej codziennie porcji energii o 5% w stosunku do grupy kontrolnej. 60
W przeprowadzonym ostatnio badaniu nad związkiem pomiędzy prebiotykami a endotoksemią Cani i wsp. 61 wykazali, że oligofruktoza zwiększa liczbę bakterii z rodzaju Bifidobacterium w jelitach myszy żywionych dietą bogatą w tłuszcze, przy czym endotoksemia jest silnie ujemnie skorelowana z kolonizacją Bifidobacterium species, choć nie jest tak w wypadku innych rodzajów bakterii jelitowych. Wykazali oni również, że u otrzymujących oligofruktozę myszy żywionych dietą bogatą w tłuszcze występuje silna dodatnia korelacja pomiędzy kolonizacją Bifidobacterium species a lepszą tolerancją glukozy, wydzielaniem insuliny pod wpływem zwiększenia stężenia glukozy oraz normalizacją stężenia czynników prozapalnych. Choć pośrednio, to jednak powyższe obserwacje dowodzą ważnej roli suplementacji prebiotyków i stanowią podstawę do dalszych badań nad używaniem prebiotyków do modyfikacji mikroflory jelitowej, w celu zmiany nawyków żywieniowych u osób otyłych i z nadwagą.
Probiotyki
Probiotyki to niepatogenne organizmy żywe, które po spożyciu przynoszą korzyści zdrowotne organizmowi gospodarza. 62 Ostatnio probiotyki stały się obiektem szczególnego zainteresowania z powodu zaskakująco pozytywnych wyników badań nad ich zastosowaniem w różnych stanach klinicznych, szczególnie w biegunkach. 63 Potencjalnie skuteczne zastosowanie probiotyków w leczeniu otyłości opisane zostało przez autorów dwóch przeprowadzonych niedawno badań. Lee i wsp. 64 badali prawdopodobne korzystne działanie Lactobacillus rhamnosus PL60, bakterii obecnej w jelicie ludzkim, wytwarzającej sprzężony kwas linolowy u myszy z otyłością indukowaną pożywieniem. Jak zaobserwowano w badaniach na zwierzętach, sprzężony kwas linolowy powoduje korzyści zdrowotne, m.in. pomaga w redukcji tkanki tłuszczowej. 65 Po 8 tygodniach doustnego stosowania Lactobacillus rhamnosus PL60 u myszy obserwowano redukcję masy ciała przy niezmiennej dziennej podaży kalorii. Dalsze badania prowadzone przez tych autorów wykazały, że skutek ten był prawdopodobnie związany z apoptozą i ekspresją mRNA w obrębie żółtej tkanki tłuszczowej. Należy jednak zauważyć, że Lactobacillus rhamnosus PL60 nie powodował zmniejszenia rozmiaru komórek w tkance tłuszczowej najądrzy, uważa się więc, że zmniejszenie masy żółtej tkanki tłuszczowej jest raczej skutkiem redukcji liczby komórek niż ich rozmiaru. Ponieważ u dorosłych ludzi liczba komórek tłuszczowych jest stała, a otyłość polega na zwiększeniu ich masy, działanie Lactobacillus rhamnosus PL60 na organizm ludzki jest niepewne. Potwierdzeniem korzystnego działania tego konkretnego probiotyku są również wyniki niedawnego badania kontrolnego z randomizacją, podczas którego 122 otyłych ochotników otrzymywało przez rok codziennie 3,4 g kwasu linolowego bądź placebo. 66 Sonnenburg i wsp. 67 skolonizowali jelita myszy germ-free bakteriami B. thetaiotaomicron i Bifidobacterium longum, powszechnie stosowanymi probiotykami. Zauważyli oni, że gdy B. thetaiotaomicron współwystępowały z B. longum, zwiększały zakres trawionych przez siebie polisacharydów i czyniły to niezależnie od genotypu gospodarza; efekt ten nie występował jednak w wypadku połączenia we wspólnej hodowli z innymi probiotykami np. Bifidobacterium animalis. Podobny efekt metaboliczny osiągano, używając probiotyku z innej grupy (Lactobacillus casei). W innym badaniu, w którym analizowano wpływ probiotyków na zwiększenie zdolności metabolicznych organizmu gospodarza, Martin i wsp. 68 podawali napoje zawierające probiotyki myszom germ-free skolonizowanym typową mikroflorą ludzkich jelit. Używając metod spektroskopii o wysokiej rozdzielczości w połączeniu z matematycznym modelowaniem, wykazali oni, że podanie probiotyku powodowało znaczne zmiany mikrobiomu oraz związane z tym zmiany metabolizmu w obrębie różnych tkanek, dotyczące metabolizmu tłuszczów, aminokwasów i wykorzystania energii. Znaczenie tych odkryć dla homeostazy energetycznej i zdrowia człowieka nie jest na razie znane, jednak sugerują one, że probiotyki mogą wpływać na dynamikę całego ekosystemu, jakim jest mikroflora jelit; pokazują też, że metody biologii molekularnej mogą być z powodzeniem stosowane w celu oceny wpływu probiotyków na metabolizm oraz na mikrobiom gospodarza.
Przyszłe kierunki badań
Aby wyjaśnić wiele wątpliwości dotyczących związku mikroflory jelitowej z otyłością, niezbędne są dalsze badania. Po pierwsze, należy odpowiedzieć na pytanie, czy obserwowane w wielu badaniach, niewielkie zmiany w ilości uzyskiwanej z trawionych pokarmów energii mogą powodować klinicznie istotne różnice w masie ciała ludzi. Niewielkie, lecz długotrwałe zmiany w homeostazie energetycznej, powodowane w tym przypadku wzrostem liczby kalorii uzyskiwanych z trawionego pożywienia, mogłyby w zasadzie prowadzić do zmian w budowie i masie ciała. 7 Po drugie, należy potwierdzić bądź wykluczyć związek pomiędzy mikroflorą jelitową (uwzględniając zarówno gatunki rzadkie, niehodowane do tej pory, jak i hodowane często i powszechne) a mechanizmami regulującymi masę ciała. Szczególnie ważne wydaje się jasne i niebudzące wątpliwości wyjaśnienie, czy różnice w składzie mikroflory jelitowej ludzi otyłych i szczupłych są przyczyną czy efektem otyłości. W tym drugim przypadku należałoby zidentyfikować sygnały hormonalne lub inne, sterujące zmianami w składzie mikroflory jelitowej. Wydaje się, że największe korzyści mogą tu przynieść metagenomiczne badania flory jelitowej myszy z otyłością indukowaną pożywieniem oraz badania polegające na transpozycji flory bakteryjnej, podobne jak opisywane powyżej badania na genetycznie zmodyfikowanych otyłych myszach. Po trzecie należy dokładnie zbadać mechanizmy odpowiedzialne za różnice w proporcjach Bacteroides, Firmicutes i archeowców w mikroflorze jelitowej u myszy i ludzi. W szczególności zaś należy odkryć czynniki genetyczne i środowiskowe decydujące o niepowtarzalnym, osobniczo różnym składzie mikroflory bakteryjnej. Po czwarte, należy określić i zbadać różnice pomiędzy mikroorganizmami kolonizującymi powierzchnię nabłonka jelit a mikroorganizmami bytującymi w świetle jelita – zarówno u osób otyłych, jak i u tych, które zredukowały masę ciała. To samo dotyczy czynników determinujących skład flory bakteryjnej w poszczególnych częściach jelita, a szczególnie bakterii bytujących na błonie śluzowej. Wreszcie, należy zaproponować sposoby ostrożnej i stopniowej modyfikacji mikroflory jelitowej, a następnie sprawdzić je w serii dobrze zaprojektowanych i monitorowanych badań kontrolnych. Badania kliniczne oceniające skuteczność prebiotyków i probiotyków powinny oceniać stan mikroflory jelitowej badanych przed terapią i po terapii. Co więcej, biorąc pod uwagę doniesienia kwestionujące bezpieczeństwo stosowania probiotyków, 69, 70 należy przeprowadzić badania w celu wyjaśnienia rzeczywistego zagrożenia związanego z ich stosowaniem.
Wnioski
Światowa epidemia otyłości, której jesteśmy świadkami, każe zwiększyć wysiłki w celu zidentyfikowania osobniczych i środowiskowych czynników wpływających na równowagę energetyczną. Wiadomo na pewno, że organizm gospodarza współpracuje z mikroflorą jelitową z korzyścią dla obu stron. Wyniki omówionych badań, w większości przeprowadzonych przy użyciu najnowszych, zaawansowanych technologicznie metod (sekwencjonowanie rRNA podjednostki 16S mikroorganizmów jelitowych z bibliotek klonów, metody metagenomiczne, mikromacierze DNA, badania na myszach germ-free oraz transplantacje mikroflory jelitowej) sugerują, że mikroflora jelitowa odgrywa istotną rolę w regulacji równowagi energetycznej i masy ciała. Sugerują one również istotne znaczenie czynników związanych z tą florą, takich jak LPS, w patogenezie cukrzycy typu 2 związanej z otyłością. Odkrycia te są obiecujące, potrzebne są jednak dalsze badania w celu wyjaśnienia związków przyczynowo-skutkowych pomiędzy zróżnicowanym składem flory jelitowej a predyspozycją do otyłości oraz ustalenia, czy modulowanie składu flory bakteryjnej może być wykorzystane w leczeniu otyłości.
Dodatek
Już po zaakceptowaniu niniejszego artykułu do publikacji, zostały opublikowane wyniki badania o bardzo dużym znaczeniu dla poruszanego problemu. Kalliomaki i wsp. 71 monitorowali florę jelitową grupy dzieci od urodzenia do siódmego roku życia. Próbki stolca pobrane w wieku 6 i 12 miesięcy zostały przeanalizowane przy użyciu metod biologii molekularnej. U dzieci, które następnie w wieku 7 lat miały prawidłową masę ciała, we wspomnianych próbkach odnotowano większą kolonizację Bifidobacterium i mniejszą zawartość bakterii Staphylococcus aureus niż u dzieci z nadwagą i otyłością, co sugeruje, że różnice w składzie mikroflory jelitowej mogą predysponować do nadwagi i otyłości.
- 1. Hensrud DD, Klein S. Extreme obesity: a new medical crisis in the United States. Mayo Clin Proc. 2006;81(10)(suppl):S5-S10.
- 2. Ogden CL, Yanovski SZ, Carroll MD, Flegal KM. The epidemiology of obesity. Gastroenterology. 2007;132(6):2087-2102.
- 3. Korner J, Leibel RI. To eat or not to eat—how the gut talks to the brain. N Engl J Med. 2003;349(10):926-928.
- 4. Huda MS, Wilding JP, Pinkney JH. Gut peptides and the regulation of appetite. Obes Rev. 2006;7(2):163-182.
- 5. Murphy KG, Dhillo WS, Bloom SR. Gut peptides in the regulation of food intake and energy homeostasis. Endocr Rev. 2006 Dec;27(7):719-727. Epub 2006 Oct 31.
- 6. Camilleri M. Integrated upper gastrointestinal response to food intake. Gastroenterology. 2006;131(2):640-658.
- 7. Hill JO. Understanding and addressing the epidemic of obesity: an energy balance perspective. Endocr Rev. 2006 Dec;27(7):750-761. Epub 2006 Nov 22.
- 8. Hill JO, Wyatt HR, Reed GW, Peters JC. Obesity and the environment: where do we go from here? Science. 2003;299(5608):853-855.
- 9. Weigle DS. Appetite and the regulation of body composition. FASEB J. 1994;8(3):302-310.
- 10. Morton GJ, Cummings DE, Baskin DG, Barsh GS, Schwartz MW. Central nervous system control of food intake and body weight. Nature. 2006;443(7109):289-295.
- 11. Gill SR, Pop M, DeBoy RT, et al. Metagenomic analysis of the human distal gut microbiome. Science. 2006;312(5778):1355-1359.
- 12. Palmer C, Bik EM, DiGiulio DB, Relman DA, Brown PO. Development of the human infant intestinal microbiota [published online ahead of print June 26, 2007]. PLoS Biol. 2007;5(7):e177. doi:10.1371/journal.pbio.0050177.
- 13. Eckburg PB, Bik EM, Bernstein CN, et al. Diversity of the human intestinal microbial flora. Science. 2005 Jun 10;308(5728):1635-1638. Epub 2005 Apr 14.
- 14. Macfarlane S, Macfarlane GT. Bacterial diversity in the human gut. Adv Appl Microbiol. 2004;54:261-289.
- 15. Frank DN, Pace NR. Gastrointestinal microbiology enters the metagenomics era. Curr Opin Gastroenterol. 2008;24(1):4-10.
- 16. Hugenholtz P, Goebel BM, Pace NR. Impact of culture-independent studies on the emerging phylogenetic view of bacterial diversity [Publisher correction appears in J Bacteriol. 1998;180(24):6793]. J Bacteriol. 1998; 180(18):4765-4774.
- 17. Amann RI, Ludwig W, Schleifer KH. Phylogenetic identification and insitu detection of individual microbial cells without cultivation. Microbiol Rev. 1995;59(1):143-169.
- 18. Ley RE, Bäckhed F, Turnbaugh PJ, Lozupone CA, Knight RD, Gordon JI. Obesity alters gut microbial ecology. Proc Natl Acad Sci U S A. 2005 Aug 2;102(31):11070-11075. Epub 2005 Jul 20.
- 19. Frank DN, St Amand AL, Feldman RA, Boedeker EC, Harpaz N, Pace NR. Molecular-phlyogenetic characterization of microbial community imbalances in human inflammatory bowel disease. Proc Natl Acad Sci U S A. 2007 Aug 21;104(34):13780-13785. Epub 2007 Aug 15.
- 20. Ginzinger DG. Gene quantification using real-time quantitative PCR: an emerging technology hits the mainstream. Exp Hematol. 2002;30(6):503-512.
- 21. Berg RD. The indigenous gastrointestinal microflora. Trends Microbiol. 1996;4(11):430-435.
- 22. Mackie RI, Sghir A, Gaskins HR. Developmental microbial ecology of the neonatal gastrointestinal tract. Am J Clin Nutr. 1999;69(5):1035S-1045S.
- 23. Gorbach SL. Intestinal microflora. Gastroenterology. 1971;60(6):1110- 1129.
- 24. Ley RE, Turnbaugh PJ, Klein S, Gordon JI. Microbial ecology: human gut microbes associated with obesity. Nature. 2006;444(7122):1022-1023.
- 25. Ouwehand A, Isolauri E, Salminen S. The role of the intestinal microflora for the development of the immune system in early childhood. Eur J Nutr. 2002;41(suppl 1):132-137.
- 26. Zoetendal EG, Akkermans ADL, Akkermans-van Vliet WM, de Visser JAGM, de Vos WM. The host genotype affects the bacterial community in the human gastrointestinal tract. Microb Ecol Health Dis. 2001;13(3):129-134.
- 27. Hopkins MJ, Sharp R, MacFarlane GT. Age and disease related chan ges in intestinal bacterial populations assessed by cell culture, 16S rRNA abundance, and community cellular fatty acid profiles. Gut. 2001;48(2):198-205.
- 28. Rolf R. Interactions among microorganisms of the indigenous intestinal flora and their influence on the host. Rev Infect Dis. 1984 Mar-Apr;(6)(suppl 1):S73-S79.
- 29. Falk PG, Hooper LV, Midtvedt T, Gordon JI. Creating and maintaining the gastrointestinal ecosystem: what we know and need to know from gnotobiology. Microbiol Mol Biol Rev. 1998;62(4):1157-1170.
- 30. Neu J, Douglas-Escobar M, Lopez M. Microbes and the developing gastrointestinal tract. Nutr Clin Pract. 2007;22(2):174-182.
- 31. Macfarlane GT, Macfarlane S. Human colonic microbiota: ecology, physiology and metabolic potential of intestinal bacteria. Scand J Gastroenterol Suppl. 1997;222:3-9.
- 32. Abrams GD, Bishop JE. Effect of the normal microbial flora on gastrointestinal motility. Proc Soc Exp Biol Med. 1967;126(1):301-304.
- 33. Stappenbeck TS, Hooper LV, Gordon JI. Developmental regulation of intestinal angiogenesis by indigenous microbes via Paneth cells. Proc Natl Acad Sci U S A. 2002 Nov 26;99(24):15451-15455. Epub 2002 Nov 13.
- 34. Backhed F, Ley RE, Sonnenburg JL, Peterson DA, Gordon JI. Hostbacterial mutualism in the human intestine. Science. 2005;307(5717):1915-1920.
- 35. Mathan VI, Wiederman J, Dobkin JF, Lindenbaum J. Geographic differences in digoxin inactivation, a metabolic activity of the human anaerobic gut flora. Gut. 1989;30(7):971-979.
- 36. Hooper LV, Midtvedt T, Gordon JI. How host-microbial interactions shape the nutrient environment of the mammalian intestine. Annu Rev Nutr. 2002;22:283-307. Epub 2002 Apr 4.
- 37. Roberfroid MB, Bornet F, Bouley C, Cummings JH. Colonic microflora: nutrition and health: summary and conclusions of an International Life Sciences Institute (ILSI) [Europe] workshop held in Barcelona, Spain. Nutr Rev. 1995;53(5):127-130.
- 38. DiBaise JK, Young RJ, Vanderhoof JA. Enteric microbial flora, bacterial overgrowth and short bowel syndrome. Clin Gastroenterol Hepatol. 2006; 4(1):11-20.
- 39. Gorbach SL. Probiotics and gastrointestinal health. Am J Gastroenterol. 2000;95(1 suppl):S2-S4.
- 40. Backhed F, Ding H, Wang T, et al. The gut microbiota as an environmental factor that regulates fat storage. Proc Natl Acad Sci U S A. 2004 Nov 2; 101(44):15718-15723. Epub 2004 Oct 25.
- 41. Backhed F, Manchester JK, Semenkovich CF, Gordon JI. Mechanisms underlying the resistance to diet-induced obesity in germ-free mice. Proc Natl Acad Sci U S A. 2007 Jan 16;104(3):979-984. Epub 2007 Jan 8.
- 42. Turnbaugh PJ, Ley RE, Mahowald MA, Magrini V, Mardis ER, Gordon JI. An obesity-associated gut microbiome with increased capacity for energy harvest. Nature. 2006;444(7122):1027-1031.
- 43. Wellen KE, Hotamisligil GS. Inflammation, stress and diabetes. J Clin Invest. 2005;115(5):1111-1119.
- 44. Cani PD, Amar J, Iglesias MA, et al. Metabolic endotoxemia initiates obesity and insulin resistance. Diabetes. 2007 Jul;56(7):1761-1772. Epub 2007 Apr 24.
- 45. Wright SD, Ramos RA, Tobias PS, Ulevitch RJ, Mathison JC. CD14, a receptor for complexes of lipopolysaccharide (LPS) and LPS binding protein. Science. 1990;249(4975):1431-1433.
- 46. Pappo I, Becovier H, Berry EM, Freund HR. Polymyxin B reduces cecal flora, TNF production and hepatic steatosis during total parenteral nutrition in the rat. J Surg Res. 1991;51(2):106-112.
- 47. Creely SJ, McTernan PG, Kusminski CM, et al. Lipopolysaccharide activates an innate immune system response in human adipose tissue in obesity and type 2 diabetes. Am J Physiol Endocrinol Metab. 2007 Mar;292(3):E740- E747. Epub 2006 Nov 7.
- 48. Chen M, Wolin MJ. Effect of monensin and lasalocid-sodium on the growth of methanogenic and rumen saccharolytic bacteria. Appl Environ Microbiol. 1979;38(1):72-77.
- 49. Samuel BS, Gordon JI. A humanized gnotobiotic mouse model of hostarchaeal-bacterial mutualism. Proc Natl Acad Sci U S A. 2006 Jun 27;103(26):10011-10016. Epub 2006 Jun 16.
- 50. Comstock LE, Coyne MJ. Bacteroides thetaiotamicron: a dynamic, niche-adapted human symbiont. Bioessays. 2003;25(10):926-929.
- 51. Samuel BS, Hansen EE, Manchester JK, et al. Genomic and metabolic adaptations of Methanobrevibacter smithii to the human gut. Proc Natl Acad Sci U S A. 2007 Jun 19;104(25):10643-10648. Epub 2007 Jun 11.
- 52. Brugman S, Klatter FA, Visser JT, et al. Antibiotic treatment partially protects against type 1 diabetes in the bio-breeding diabetes-prone rat: is the gut flora involved in the development of type 1 diabetes? Diabetologia. 2006 Sep;49(9):2105-2108. Epub 2006 Jul 1.
- 53. Roberfroid MB. Functional foods: concepts and application to inulin and oligofructose. Br J Nutr. 2002;87(suppl 2):S139-S143.
- 54. Gibson GR, Beatty ER, Wang X, Cummings JH. Selective stimulation of bifidobacteria in the human colon by oligofructose and inulin. Gastroenterology. 1995;108(4):975-982.
- 55. Cani PD, Dewever C, Delzenne NM. Inulin-type fructans modulate gastrointestinal peptides involved in appetite regulation (glucagon-like peptide and ghrelin) in rats. Br J Nutr. 2004;92(3):521-526.
- 56. Cani PD, Neyrinck AM, Maton N, Delzenne NM. Oligofructose promotes satiety in rats fed a high-fat diet: involvement of glucagon-like peptide-1. Obes Res. 2005;13(6):1000-1007.
- 57. Delzenne NM, Cani PD, Daubioul C, Neyrinck AM. Impact of inulin and oligofructose on gastrointestinal peptides. Br J Nutr. 2005;93(suppl 1):S157- S161.
- 58. Kleessen B, Hartmann L, Blaut M. Oligofructose and long-chain inulin: influence on the gut microbial ecology of rats associated with a human faecal flora. Br J Nutr. 2001;86(2):291-300.
- 59. Archer BJ, Johnson SK, Devereux HM, Baxter AL. Effect of fat replacement by inulin or lupin-kernel fibre on sausage patty acceptability, post-meal perceptions of satiety and food intake in men. Br J Nutr. 2004;91(4):591-599.
- 60. Cani PD, Joly E, Horsmans Y, Delzenne NM. Oligofructose promotes satiety in healthy humans: a pilot study. Eur J Clin Nutr. 2006;60(5):567-572.
- 61. Cani PD, Neyrinck AM, Fava F, et al. Selective increases of bifidobacteria in gut microflora improve high-fat-diet-induced diabetes in mice through a mechanism associated with endotoxaemia. Diabetologia. 2007 Nov; 50(11):2374-2383. Epub 2007 Sep 6.
- 62. Schrezenmeir J, de Vrese M. Probiotics, prebiotics, and synbiotics – approaching a definition. Am J Clin Nutr. 2001;73(2)(suppl):361S-364S.
- 63. Floch MH, Montrose DC. Use of probiotics in humans: an analysis of the literature. Gastroenterol Clin North Am. 2005;34(3):547-570.
- 64. Lee HY, Park JH, Seok SH, et al. Human originated bacteria, Lactobacillus rhamnosus PL60, produce conjugated linoleic acid and show anti-obesity effects in diet-induced obese mice. Biochim Biophys Acta. 2006 Jul;1761(7):736-744. Epub 2006 May 20.
- 65. Park Y, Albright KJ, Liu W, Storkson JM, Cook ME, Pariza MW. Effect of conjugated linoleic acid on body composition in mice. Lipids. 1997;32(8):853-858.
- 66. Larsen TM, Toubro S, Gudmundsen O, Astrup A. Conjugated lin oleic acid supplementation for 1 y does not prevent weight or body fat regain. Am J Clin Nutr. 2006;83(3):606-612.
- 67. Sonnenburg JL, Chen CT, Gordon JI. Genomic and metabolic studies of the impact of probiotics on a model gut symbiont and host. PLoS Biol. 2006; 4(12):e413. doi:10.1371/journal.pbio.0040413.
- 68. Martin FPJ, Wang Y, Sprenger N, et al. Probiotic modulation of symbiotic gut microbial-host metabolic interaction in a humanized microbiome Mouse model. Mol Syst Biol. 2008;4:157. doi:10.1038/msb4100190.
- 69. Besselink MG, van Santvoort HC, Buskens E, et al. Probiotic prophylaxis in predicted severe acute pancreatitis: a randomised, double-blind, placebo- controlled trial [published online ahead of print February 13, 2008]. Lancet. doi: 10.1016/S0140-6736(08)60207-X.
- 70. Hoffman FA, Heimbach JT, Sanders ME, Hibberd PL. Executive summary: scientific and regulatory challenges of development of probiotics as foods and drugs. Clin Infect Dis. 2008;46(suppl 2):S53-S57.
- 71. Kalliomäki M, Carmen Collado M, Salminen S, Isolauri E. Early differences in fecal microbiota composition in children may predict overweight. Am J Clin Nutr. 2008;87(3):534-538.
Następny artykuł:
Flora bakteryjna jelit i jej potencjalny związek z otyłością
 Dodaj do ulubionych
